Que estratégias de reprodução sexuada adoptam os seres vivos?
A meiose é um mecanismo de divisão nuclear típico dos seres vivos que se reproduzem sexuadamente, já que é responsável pela redução do número cromossomático de uma célula e, logicamente, da quantidade de DNA.
Uma célula que sofra meiose origina quatro células-filhas, possuindo cada uma delas metade do número de cromossomas da célula-mãe e um quarto do teor de DNA (n cromossomas e Q DNA). Além disso, estas quatro células-filhas são geneticamente diferentes, quer entre si quer em relação à célula-mãe. A meiose corresponde, por isso, à passagem da diploidia à haploidia.

A meiose permite a formação de gâmetas (meiose pré-gamética), de esporos (meiose pré-espórica) e pode mesmo ocorrer sobre o zigoto (meiose pós-zigótica) em seres mais simples como a Spirogyra (alga filamentosa).
Ao permitir a formação de gâmetas a meiose permite a ocorrência do mecanismo complementar, a fecundação, mantendo deste modo o número cromossomático específico da espécie que se reproduz sexuadamente.

Assim, por exemplo, o Homem que possui 46 cromossomas nas células somáticas (todas as células não sexuais), possui gâmetas (células sexuais) com 23 cromossomas, cada um deles com origem num cromossoma de cada par de cromossomas homólogos, mantendo, desta forma, uma informação genética semelhante. Caso não ocorresse a meiose para formar estes gâmetas, no momento da fecundação (junção do gâmeta feminino com o masculino), em vez de um ovo com 46 cromossomas formar-se-ia um ovo com 92 cromossomas, aumentando este número sempre que ocorresse fecundação.

Quando ocorre a fecundação, isto é, quando o gâmeta paterno se une ao gâmeta materno, ocorre a cariogamia, ou seja, a junção dos dois núcleos haplóides (núcleos com n cromossomas), formando-se um único núcleo diplóide (núcleo com 2n cromossomas).
Posteriormente ocorre a replicação do DNA (de 2Q passa a 4Q) e dá-se a plasmogamia, isto é, unem-se o citoplasma e as membranas citoplasmáticas dos dois gâmetas, formando-se o ovo ou zigoto (célula diplóide com 2n de cromossomas e 4Q de DNA).
Uma célula diplóide é aquela que possui pares de cromossomas homólogos no seu núcleo, isto é, um cromossoma de origem paterna e outro de origem materna, que transportam o mesmo conjunto de genes, possuindo, por esse facto, a mesma forma e tamanho. O cariótipo corresponde ao conjunto de cromossomas característico de uma célula, apresentando ainda uma forma e dimensões características.
Uma célula haplóide é aquela que possui apenas um cromossoma de cada par de cromossomas homólogos. No caso dos cromossomas sexuais, uma célula haplóide só possui o cromossoma X ou então o cromossoma Y, nunca os dois cromossomas. Por exemplo, um gâmeta é uma célula haplóide, pois possui apenas metade do número normal de cromossomas de uma célula somática.
A quantidade de DNA é dupla da quantidade de cromossomas, pois cada cromossoma é constituído por dois cromatídios unidos por um centrómero. Cada cromatídio é constituído por uma dupla cadeia de DNA enrolada em conjuntos de oito proteínas (histonas), constituindo os nucleossomas. Como cada cromatídio possui uma cadeia de DNA e um cromossoma possui dois cromatídios, cada cromossoma possui duas cadeias de DNA, logo, a quantidade de DNA é o dobro do número de cromossomas. Além disso, como os cromossomas são constituídos por DNA, que possui uma estrutura em dupla hélice, estes podem espiralizar ou desespiralizar a sua cadeia. Acresce ainda que estas cadeias podem condensar, sendo assim visíveis os cromossomas, mas, se a cromatina estiver descondensada, os cromossomas já não são visíveis.
A meiose é um processo de divisão nuclear que permite que uma célula diplóide origine quatro células haplóides. Este mecanismo é constituído por duas divisões: a divisão l, ou reducional, e a divisão II, ou equacional.

A divisão l deve o seu nome de reducional ao facto de durante as suas quatro etapas ocorrer a redução do número de cromossomas para metade, acompanhada, logicamente, de uma redução do teor de DNA. No final da divisão l formam-se duas células com n cromossomas e 2Q de DNA.

A divisão II é uma divisão equacional, pois o número de cromossomas mantém-se, embora o teor de DNA se reduza a metade. No final desta etapa, cada uma das duas células anteriormente formadas origina duas células, cada uma com n cromossomas e Q de DNA.

No final das duas divisões da meiose existem quatro células com n cromossomas e Q de DNA, tendo o número de cromossomas sido reduzido a metade e a quantidade de DNA a um quarto. A meiose, em linhas gerais, corresponde à ocorrência de duas mitoses sucessivas numa célula, coincidindo a divisão II praticamente com a mitose e encontrando-se as maiores diferenças na divisão I.
- Os cromossomas, já constituídos por dois cromatídios desde o período S da interfase, vão ficando sucessivamente mais condensados, tornando-se mais visíveis.
- Os dois cromossomas homólogos de cada par emparelham, constituindo esse conjunto um bivalente, díada cromossómica ou tétrada cromatídica, uma vez que cada cromossoma é constituído por dois cromatídios. O processo de emparelhamento designa-se por sinapse e consiste numa justaposição gene a gene entre os dois cromossomas homó logos. Durante a sinapse surgem pontos de cruzamento entre dois cromatídios de cromossomas homólogos, os pontos de quiasma. Ao nível dos quiasmas pode haver quebra dos cromatídios, podendo ocorrer trocas recíprocas de segmentos de cromatídios pertencentes aos dois cromossomas homólogos de cada bivalente, designando-se esse fenómeno por crossing-over.
- O invólucro nuclear e os nucléolos desagregam-se e vai-se constituindo o fuso acromático.
- Os fenómenos que ocorrem na profase l tornam-na longa, podendo, em alguns casos, durar semanas, meses ou anos. Ocupa cerca de 90% do tempo global da meiose.

- Etapa caracterizada pela desorganização nuclear, uma das mais importantes fases da meiose, sendo a fase preparatória para a redução cromossomática, além de introduzir variabilidade genética. Os cromossomas, finos e compridos, começam a condensar, tornando-se cada vez mais grossos, curtos e visíveis. Os cromossomas homólogos emparelham, originando as díadas cromossómicas ou bivalentes. Os genes de cada cromossoma homólogo justapõem-se, ocorrendo a sinapse. Os cromossomas individualizam-se nos seus dois cromatídios unidos por um centrómero. Deste modo, cada bivalente passa a ser constituído por quatro cromatídios e dois centrómeros, surgindo as tétradas cromatídicas. Durante a sinapse podem originar-se pontos de quiasma, isto é, pontos de cruzamento/recombinação entre os cromossomas homólogos. Nos pontos de quiasma pode ocorrer crossing-over, isto é, ocorrer uma troca de segmentos de cromatídios de cromossomas homólogos. O crossing-over é um dos responsáveis pela variabilidade genética, já que altera o conteúdo genético dos cromossomas homólogos. No final da profase l os cromossomas atingem o máximo da condensação, sendo grossos e curtos, diminuindo o número de pontos de quiasma. Os centríolos duplicam e migram para pólos opostos. Forma-se o fuso acromático, a partir de microfilamentos proteicos, com origem nos centríolos. Os microfilamentos proteicos originam uma estrutura radial à volta dos centríolos - os ásteres. A membrana nuclear e os nucléolos desorganizam-se. Os cromossomas prendem-se a filamentos do fuso acromático (fibrilas cromossómicas) através dos seus centrómeros, enquanto outros filamentos do fuso acromático ficam livres, indo de pólo a pólo (fibrilas contínuas). Nesta etapa não ocorre alteração nem do número de cromossomas (2n) nem do teor de DNA (4Q).

- É caracterizada pela formação da placa equatorial. Os bivalentes organizam-se no plano equatorial do fuso acromático, originando a placa equatorial. Cada bivalente é constituído por dois cromossomas homólogos e dois centrómeros (quatro cromatídios e dois centrómeros). O plano equatorial é definido pelos pontos de quiasma entre os cromossomas homólogos, estando os centrómeros voltados para os pólos opostos. A orientação dos cromossomas homólogos na placa equatorial é efectuada ao acaso, sendo um dos aspec tos que introduz variabilidade genética nos seres vivos que se reproduzem sexuadamente. Não ocorre alteração nem do número de cromossomas (2n) nem do teor de DNA (4Q).

Caracterizada pela ascensão polar dos cromossomas homólogos. Ocorre a separação dos cromossomas homólogos, migrando estes para pólos opostos, com a orientação já definida na metafase l. Cada cromossoma é constituído por dois cromatídios unidos por um centrómero, não ocorrendo, por este motivo, clivagem dos centrómeros. Esta etapa é responsável pela redução cromossómica que se verifica na meiose, assim como do teor de DNA. Durante esta fase o número de cromossomas é reduzido para metade (passa de 2n a n), assim como o teor de DNA (passa de 4Q a 2Q). O núcleo diptóide origina, no final da etapa, dois núcleos haplóides.

- Corresponde a uma etapa de organização nuclear. Esta etapa inicia-se com a chegada dos cromossomas homólogos aos dois pólos celulares, onde iniciam uma descondensação. Os cromossomas ficam novamente finos e compridos. O fuso acromático desagrega-se, os nucléolos reorganizam-se, assim como as duas membranas nucleares à volta dos dois pólos que contêm os cromossomas. Os dois núcleos formados têm, cada um deles, metade do número inicial de cromossomas, tendo-se passado de um núcleo diplóide (2n) para dois núcleos haplóides (n). Durante o decorrer da telofase l não ocorre alteração do número de cromossomas (n) nem do teor de DNA (2Q). A citocinese pode ocorrer durante as duas últimas etapas, levando à formação de duas células haplóides.
Divisão II

Esta etapa é caracterizada por uma nova desorganização nuclear. Ocorre após uma interfase sem período de síntese (período S) e tem as características da profase mitótica. A cromatina condensa, tornando-se, por esse motivo, os cromossomas cada vez mais curtos e grossos. Os cromossomas individualizam-se nos seus dois cromatídios unidos por um centrómero. Os centríolos duplicam e migram para pólos opostos da célula. Formam-se os ásteres e um fuso acromático. O nucléolo desorganiza-se, assim como a membrana nuclear. Os cromossomas, através dos centrómeros, prendem-se às fibrilas cromossomáticas do fuso acromático. Durante a profase M não ocorre alteração do número de cromossomas (n) nem do teor de DNA (2Q).
Caracterizada pela formação da placa equatorial. Os cromossomas, constituídos por dois cromatídios e um centrómero, alinham-se no plano equatorial do fuso acromático. O alinhamento é efectuado pelos centrómeros, ficando os braços dos cromatídios voltados para fora. A metafase II é equivalente à metafase mitótica. Durante o decorrer da metafase II não ocorre alteração do número de cromossomas (n) nem do teor de DNA (2Q).

Caracterizada pela ascensão polar dos cromossomas-filhos. O centrómero cliva e os cromatídios de cada cromossoma separam-se, originando cada cromossoma dois cromossomas—filhos. Cada cromossoma-filho passa a ser constituído por meio centrómero e um cromatídio. Os cromossomas-filhos podem ser geneticamente diferentes devido à ocorrência de crossing-over durante a profase I. Ao contrário da anafase l, na anafase II não ocorre redução cromossomática, mas apenas redução no teor de DNA. A anafase II é equivalente à anafase mitótica. Durante a ocorrência da anafase II há redução do teor de DNA (passa de 2Q a Q), não existindo alteração do número de cromossomas (n).
Corresponde à etapa inversa da profase II, ocorrendo a organização nuclear. A membrana nuclear reorganiza-se à volta de cada conjunto de cromossomas-filhos (células-filhas). Os nucléolos reorganizam-se. O fuso acromático desorganiza-se. Os cromossomas tornam-se cada vez mais finos e flexuosos. A célula fica constituída por dois núcleos com o mesmo número de cromossomas, mas que podem ser geneticamente diferentes. Durante o decorrer da telofase II não ocorre alteração do número de cromossomas (n) nem do teor de DNA (Q). Cada uma das duas células formadas no final da telofase l origina duas novas células, o que significa que uma célula diplóide ao sofrer meiose origina quatro células haplóides. A citocinese pode iniciar-se durante a anafase II e prolongar-se pela telofase II.
A reprodução assexuada é usada por seres pouco evoluídos e consiste em mitioses.
Bipartição: Uma mitose onde não existe ascensão polar e o DNA é simplesmente repartido quando se dá a citocinese. Formam-se duas células-folhas semelhantes à mãe e que irão depois crescer até ao tamanho da progenitora e dividirirem-se. Comum nos procariontes unicelulares e presente, mas menos frequentemente, nos eucariontes.
Fragmentação: Consiste na repartição de um indivíduo e no crescimento desse fragmento até atingir a maturidade. Usado pelas algas e por certos animais pouco diferenciados.
Gemulação: Consiste na criação de um apêndice chamado gomo ou gema que vai se vai evoluír até formar um indivíduo jovem. Esse apêndice vai-se separar e continuar o seu crescimento. Podemos ver este comportamento em plantas, seres unicelulares e animais pluricelulares.
Partenogénese: Vê-se o desenvolvimento de um oócito não-fecundado, no entanto, simula-se esse acontecimento, onde o papel do espermatozóide é tomado pelo corpo polar (que possui n cromossomas) que já se encontra dentro do óvulo.
Devido a estímulos exteriores, o núcleo do oócito e o corpo polar fundem-se, por oposição à junção dos núcleos dos gâmeta, onde o corpo polar é expulso.
Ocorre em plantas, e peixes e animais.
Esporulação: Formam-se esporos muito resistentes por mitose, que se juntam para formar estruturas conhecidas como esporângios. É usada por fungos e algas.
Multiplicação vegetativa: Reprodução só permitida pela existência de meristemas (células diferenciáveis) nas plantas .
Por Folhas: Formação de gemas nas folhas, que caem e se desenvolvem.
Por Estolhos: Formação de caules que se estendem por uma grande área de terra. Destes estolhos, formam-se novas plantas. O estolho morre quando as filhas ganham a capacidade de se alimentarem (desenvolvendo folhas e raízes)
Por Rizomas: Os rizomas são estolhos subterrâneos. Possuem um alcance menor e são muito ricos em nutrientes. Graças a estas caractererísticas, a planta nunca morre enteiramente, visto que só morre a parte aérea e não o rizoma que a está alimentar.
Por Tubérculos: Caules subterrâneos volumosos e ricos em nutriente, que possuem a capacidade de germinar plantas.
Por Bolbos: Caules subterrâneos munidos de um gomo terminal grande e possuindo uma grande concentração de nutrientes. Quando a altura é apropriada, cria gomos laterais que vão originar novas plantas.
Multiplicação vegetativa artificial
Por Estacaria: Fragmentação das plantas (as estruturas resultantes são apelidadas de estacas) e implementação das mesmas no solo. As estacas irão então desenvolver raízes e gomos e crescer.
Por Mergulhia: Enterra-se um ramo no chão, ficando com a terminação exposta ao ar. A parte enterrada irá criar raízes e o ramo comportar-se-á como uma planta singular.
Por Alporquia: Quando não é possível dobrar o ramo desta forma,corta-se o ramo, expondo o interior da planta e fixá-la a um recipiente com terra.
Por Enxertia: Consiste na transplantação da parte de uma planta (dadora) noutra (cavalo).
Por Garfo: Consiste na abertura de uma fenda no cavalo, onde são introduzidos garfos (pedaços de ramos da dadora). Esta parte é depois isolada com terra, para ajudar à cicatrização.
Por Encosto: Descasca-se o ramo do cavlo e da dadora (onde eles se vão juntar) e fixam-se os dois ramos com fita, depois de cicatrizada, corta-se a planta dadora abaixo da área de junção e o cavalo acima da área de junção.
Por Borbulha: Abre-se a casca em T, implanta-se uma gema do dador na casca do cavalo e depois, cicatriza-se.
Esta reprodução é vantajosa económica para o Homem, mas para o ser, possui várias desvantagens pois a evolução é dificultada devido à clonagem, se o meio mudar e for desfavorável ao ser-mãe, todos os seres-filhos morrerão com ela.
O que caracteriza o crescimento e regeneração de tecidos e a diferenciação celular?
Bem, o crescimento dos organismos multicelulares ocorre por processos de mitose sucessivos, havendo o aumento do número de células no organismo
A regeneração dos tecidos depende, em parte, da presença de células pouco diferenciadas (ou com a capacidade de reverter a diferenciação), a partir das quais se pode formar qualquer célula daquele tecido.
A diferenciação celular é regulada por um conjunto de genes e proteínas.
Diferenciação celular e erros
Durante processos de divisão e diferenciação celular, podem ocorrer erros e originar células cancerosas.
As células cancerosas manifestam desregulação celular, pelo que estão em constante divisão, aumentando exponencialmente o seu número e o volume do tumor.
Em última instância dá-se o mau funcionamento de um órgão e até a morte do indivíduo.
Factores externos, como a exposição a radiações (solares, radioactivas), a ingestão ou contacto com algumas substâncias químicas e certos vírus, podem potenciar estas alterações.
Ciclo celular

Qualquer ser vivo pluricelular já foi um dia constituído por uma única célula, o ovo ou zigoto.
Isto significa que o número das suas células aumentou, ou seja, tiveram de se dividir, mantendo as características de célula-ovo. Além disso, estes seres vivos também aumentaram de número, o que implica que se reproduziram, mantendo também as suas características genéticas. Nos seres unicelulares, como já deves ter percebido, a divisão celular destes indivíduos sobrepõe-se à reprodução, pois ao dividirem-se aumenta o número total de células, por isso reproduzem-se.
A divisão celular constitui assim um mecanismo fundamental para o crescimento, reprodução e manutenção das características físicas e genéticas dos indivíduos.
A divisão celular ocorre numa célula-mãe que irá originar células-filhas com a mesma informação genética (DNA). O conjunto de modificações que uma célula sofre desde que surge até que se transforma em célula-mãe, originando células-filhas, constitui o ciclo celular.
O ciclo celular é constituído por duas etapas: a interfase, que corresponde ao período compreendido entre o fim de uma divisão celular e o início de outra, e a fase mitótica, que corresponde ao período de divisão propriamente dito.
Período G1 - Ocorre entre o fim da mitose e o início da síntese do DNA, sendo, por este motivo, também chamado de período pós-mitótico. E caracterizado por uma intensa biossíntese.
Período S - Caracterizado pela ocorrência de auto-replicação do DNA.
Período G2 - Separa o fim da síntese do DNA do início de nova mitose, sendo, por este motivo, também chamado período pré-mitótico. É caracterizado pela ocorrência de biossínteses.
Mitose
Profase - Fase caracterizada por uma desorganização nuclear.
Metafase - Fase caracterizada pela formação de uma placa equatorial.
Anafase - Nesta etapa ocorre a ascensão polar dos cromossomas-filhos.
Telofase - Fase caracterizada pela organização celular.
Citocinese
A citocinese corresponde à divisão do citoplasma e das membranas, levando à individualização das duas células-filhas.
A mitose corresponde a um processo de divisão nuclear em que uma célula-mãe origina duas células-filhas que mantêm a mesma quantidade de cromossomas e o mesmo teor e características de DNA.
A mitose é o mecanismo que possibilita o aumento do número de células, sempre com as mesmas características, e por isso permite a cicatrização das tuas feridas, a substituição diária das células mortas da tua pele, a regeneração das barbatanas dos peixes, o teu crescimento e o dos outros seres vivos pluricelulares e permite ainda a reprodução nos seres unicelulares. A clonagem, tão falada hoje em dia, é um processo de reprodução baseado na mitose, já que a clonagem corresponde à produção de indivíduos geneticamente iguais, o que é possível através de mitoses sucessivas (entre outros processos).
O processo mitótico é semelhante para todos os seres vivos, apresentando diferenças em alguns, nomeadamente nas plantas .
Etapa caracterizada por uma desorganização nuclear. A cromatina condensa, tornando-se cada vez mais grossa e curta. Os cromossomas tornam-se cada vez mais visíveis, individualizando-se os seus dois cromatídios unidos por um centrómero. Os centríolos duplicam e migram para pólos opostos. Forma-se o fuso acromático, a partir de microfilamentos proteicos, com origem nos centríolos. Os microfilamentos proteicos originam uma estrutura radial à volta dos centríolos - os ásteres. A membrana nuclear e os nucléolos desorganizam-se. Os cromossomas prendem-se a filamentos do fuso acromático (fibrilas cromossómicas) através dos seus centrómeros, enquanto outros filamentos do fuso acromático ficam livres, indo de pólo a pólo (fibrilas contínuas). Não ocorre alteração do teor de DNA (4Q) nem do número de cromossomas (2n).
A etapa é caracterizada pela formação da placa equatorial. Os cromossomas, constituídos por dois cromatídios e um centrómero, alinham-se no plano equatorial do fuso acromático. O alinhamento é efectuado pelos centrómeros, ficando os braços dos cromatídios voltados para fora. Não ocorre alteração do teor de DNA (4Q) nem do número de cromossomas (2n).
A etapa é caracterizada pela ascensão polar dos cromossomas-filhos. O centrómero cliva e os cromatídios de cada cromossoma-mãe separam-se, originando dois cromossomas-filhos. Cada cromossoma-filho passa a ser constituído por meio centrómero e um cromatídio. O número de cromossomas (2n) não se altera, pois ocorreu uma divisão equitativa dos mesmos. Não ocorreu também qualquer variação genética, o que mantém a estabilidade genética da espécie. O teor de DNA foi reduzido a metade (2Q), pois ocorreu uma separação dos cromatídios de cada um dos cromossomas-mães.
Corresponde à etapa inversa da profase, ocorrendo a organização celular. A membrana nuclear reorganiza-se à volta de cada conjunto de cromossomas-filhos (células-filhas). Os nucléolos reorganizam-se. O fuso acromático desorganiza-se. Os cromossomas tornam-se cada vez mais finos e flexuosos. A célula fica constituída por dois núcleos com a mesma informação genética. Não ocorre alteração do teor de DNA (2Q) nem do número de cromossomas (2n).

Citocinese
A citocinese corresponde à divisão do citoplasma e da membrana citoplasmática (e da parede celular, nas células vegetais), acompanhada de movimentos citoplasmáti-cos. É por isso a citocinese que individualiza as duas células-filhas após o término da mitose. Esta divisão inicia-se no decorrer da mitose, mais propriamente no final da ana-fase e durante a telofase.
A citocinese apresenta aspectos diferentes consoante se trate de uma célula animal ou vegetal. Na célula animal, devido à presença de apenas uma membrana, a membrana citoplasmática, a divisão ocorre por efeito de um estrangulamento. Na zona do plano equatorial da célula forma-se um anel contráctil de microfilamentos proteicos, que ao contraírem vão puxando a membrana citoplasmática para dentro, provocando um estrangulamento que separa a célula-mãe em duas células-filhas.
Na célula vegetal, a existência de uma parede celular rígida impede a possibilidade de um estrangulamento citoplasmático e da membrana. Deste modo, vesículas golgianas alinham-se na zona equatorial, fundindo-se e originando uma estrutura chamada fragmoplasto, que irá originar o sistema membranar das células-filhas. A membrana das vesículas golgianas originará a membrana citoplasmática de cada célula-filha, que posteriormente serão recobertas por fibrilas de celulose que darão origem às paredes celulares.

Fase Mitótica em células animais e vegetais

Variação do teor de DNA ao longo do ciclo celular

O DNA, ao longo do ciclo celular, sofre uma duplicação, passando de 2Q a 4Q, e uma redução, passando de 4Q a 2Q .
A interfase corresponde a um período localizado entre duas mitoses sucessivas. No período G,, imediatamente a seguir ao término da mitose, a célula possui 2Q de DNA, já que cada cromossoma é constituído por um cromatídio, logo, uma só cadeia de DNA. Como esta célula vai sofrer uma nova mitose, o seu DNA vai ser reposto na totalidade, o que acontece durante o período S, em que ocorre a replicação semiconservativa do DNA. No final do período S a célula possui 4Q de DNA, que se vai manter durante o período G2, que tal como o período G1 é uma etapa de crescimento celular. Durante a interfase não ocorre, porém, qualquer alteração no número de cromossomas, que é 2n.
A célula entra em mitose, iniciando-se pela profase. A profase, sendo uma fase de desorganização nuclear, não afecta nem o número de cromossomas (2n) nem a quantidade de DNA (4Q), acontecendo o mesmo durante a metafase, em que se forma a placa equatorial. No entanto, a anafase é a única etapa da mitose em que há redução do teor de DNA. De facto, na anafase, ocorre a separação dos cromatídeos de cada cromossoma, passando cada um deles a constituir um novo cromossoma. Estes novos cromossomas migram para os pólos opostos das células. Como cada um destes cromossomas tem agora apenas um cromatídio, a quantidade de DNA foi reduzida a metade (passa de 4Q a 2Q), pois existe apenas uma cadeia de DNA.
O número de cromossomas mantém-se (2n) sendo, porém, cada cromossoma-filho constituído por um só cromatídio e meio centrómero. A telofase, como fase inversa da profase, não altera nem o número de cromossomas nem o teor de DNA.
É o núcleo das células eucarióticas que contém a maior parte da informação genética relativa às características hereditárias. Por sua vez, o citoplasma constitui o meio indispensável à realização dos fenómenos que tornam possível a manifestação dessas características.
Há diferenças entre o material genético dos seres procariontes e o dos seres eucariontes, como se pode ver no quadro seguinte:

O DNA está localizado essencialmente no núcleo, fazendo parte da constituição dos cromossomas.
Ácidos Nucleicos
Foi Altman que introduziu o termo ácido nucleico, porque foi pela primeira vez identificado no núcleo e manifesta propriedades ácidas.
A unidade estrutural dos ácidos nucleicos designa-se por nucleótido.

Este possui:
· 1 Ácido fosfórico – responsável pelo carácter ácido.
· 1 Pentose – é um glícido, chamado de desoxirribose, no DNA, e ribose, no RNA.
· 1 Base azotada – Existem 5 tipos de bases azotadas, com 1 apenas presente no DNA e outra no RNA:
o Existem, bases azotadas de anel duplo, como a adenina (A) e a guanina (G).
o Enquanto as outras 3 são de anel simples, como a citosina (C), a timina, apenas está presente no DNA e o uracilo (U), este está apenas presente no RNA.
Estrutura do DNA: modelo de Watson e Crick

A elaboração do modelo de DNA por Watson e Crick, em 1953, baseou-se em trabalhos de vários investigadores que ao longo de cerca de dez anos foram contribuindo para o conhecimento desta molécula.
Nesta molécula verifica-se que:
- Todas as espécies a fase da Terra, apresentam A,T,C e G como bases azotadas
- a molécula de DNA é constituída por duas cadeias polinucleotídicas enroladas em hélice - dupla hélice - à volta de um eixo central;
- a ligação entre as cadeias faz-se por pontes de hidrogénio, pois a adenina liga-se à timina através de duas pontes de hidrogénio e a guanina liga-se à citosina através de três pontes de hidrogénio;
- as duas cadeias da dupla hélice dispõem-se em sentido oposto uma em relação à outra, isto é, são antiparalelas.
- Cada cadeia de nucleotídeos tem, nas suas extremidades, uma ponta livre, designando-se uma por 3' e outra por 5'. São estas extremidades que determinam o sentido da cadeia, cuja formação ocorre sempre de 5' para 3'. Na molécula de DNA, à extremidade 5' de uma cadeia corresponde a extremidade 3' da cadeia complementar, o que justifica a designação de antiparalelas.
- A razão entre adenina e timina e entre citosina e a guanina é sempre 1.
Estrutura do RNA
A molécula do ácido ribonucleico é constituída por uma cadeia polinucleotídica, cujos nucleótidos são formados por fosfato, ribose e uma das seguintes bases azotadas: citosina, adenina, guanina e uracilo.
O RNA apresenta-se geralmente em cadeias simples e, atendendo às funções específicas que desempenha, pode ocorrer em formas estruturais diferentes.

Há três tipos de RNA:
- RNAm (RNA mensageiro), que transporta a mensagem do DNA do núcleo para o citoplasma;
- RNAt (RNA de transferência), que transporta os aminoácidos para junto dos ribossomas;
- RNAr (RNA ribossómico), uma molécula larga e dobrada que, juntamente com algumas proteínas, forma o ribossoma.
Localização do RNA
O RNA encontra-se no nucléolo, no citoplasma, nas mitocôndrias e nos cloroplastos. Pela análise do Teste de Brachet ficamos a saber que:
- DNA se localiza essencialmente no núcleo;
- RNA se localiza no citoplasma e no nucléolo.

Replicação do DNA
O suporte químico da informação genética é o DNA. Cada célula pode transmitir integralmente essa informação genética às células--filhas, graças à replicação.
Até 1958, existiam três hipóteses para explicar a replicação do DNA:
Hipótese semiconservativa - cada molécula de DNA dá origem a duas moléculas constituídas por duas cadeias polinucleotídi-cas, uma molécula-mãe e outra recém-formada;
Hipótese conservativa - a partir de uma molécula-mãe de DNA, forma-se uma molécula de DNA nova, mantendo-se intacta a molécula-mãe;
Hipótese dispersiva - as moléculas de DNA são formadas a partir de alguns nucleótidos da molécula-mãe e de outros nucleótidos novos .
O DNA apresenta duas propriedades que lhe permitem desempenhar um papel importante no controlo celular: a capacidade de autoduplica-ção e a síntese de RNA. Com a divisão celular, os genes duplicam-se e cada célula-filha recebe um conjunto de genes igual ao que existia na célula-mãe. Ocorre, portanto, a duplicação de cada uma das moléculas de DNA.

A duplicação dá-se do seguinte modo:
Ocorre o rompimento das pontes de hidrogénio entre as bases azotadas;
os nucleotídeos livres de DNA encaixam-se nas duas cadeias que se afastam, obedecendo ao pareamento entre as bases (adenina--timina e citosina-guanina);
após a união das bases, os nucleótidos unem-se entre si através de ligações entre a pentose (desoxirribose) e o fosfato.
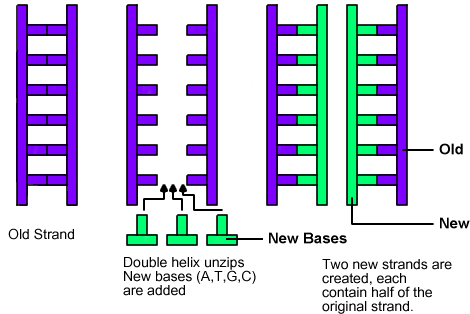
Temos, assim, duas moléculas de DNA idênticas, cada uma contendo uma cadeia-mãe e outra recém-formada. Este tipo de duplicação é designado por semiconservatívo.
Para que o DNA se replique há a intervenção de uma enzima específica, a DNA-polimerase. Na presença desta enzima ocorrem as seguintes etapas:
- as pontes de hidrogénio, que ligam as bases azotadas, rompem-se e os dois filamentos afastam-se;
- os nucleotídeos livres do DNA, que já existem no citoplasma, encaixam nos filamentos que se afastam. O encaixe só ocorre entre bases azotadas complementares (adenina com timina ou citosina com guanina);
- os filamentos, quando completados com novos nucleótidos, formam duas moléculas, idênticas entre si. Em cada molécula há um filamento antigo, que pertencia à molécula original, e um novo, que se formou sobre o antigo. Cada molécula-filha conserva metade da molécula-mãe.
É também o DNA que determina a sequência de bases do RNA. Neste caso, somente uma cadeia do DNA (hélice activa) é que serve de molde para formar RNA. O RNA produzido será uma hélice simples (cadeia linear).

Segundo o modelo semiconservativo , a cadeia de DNA abre por intermédio de uma enzima, a DNA-polimerase, que vai provocando a quebra das pontes de hidrogénio existentes entre as bases azotadas das duas cadeias polinucleotídicas. Cada uma destas duas cadeias abertas serve de molde à formação de duas novas cadeias de DNA, que se formam por complementaridade das bases azotadas, tendo os nucleótidos origem em nucleótidos livres que se encontram no nucleoplasma. Os nucleótidos ligam-se uns aos outros por acção enzimática e no sentido 5' —> 3', ou seja, as duas novas cadeias crescem em sentidos opostos.
O DNA constitui o suporte universal da informação genética (com excepção de alguns vírus que não têm DNA) pois são elas que codifica mas proteínas, que são essenciais essencial para a vida pois são as proteínas que constroem o nosso corpo e definem quem somos.
É aqui que entra o código genético. Ele depende de uma sequência de nucleótidos, e podemos descobrir, recorrendo a uma tabela de combinações possíveis, que o número de nucleótidos necessários para codificar um aminoácido é três. Um conjunto de 3 nucleótidos é designado por codão.
. O código possui algumas características importantes:
- Universalidade – Os codões têm o mesmo significado para quase todos os seres.
- Degenerescência – Um aminóacido pode ser codificado por mis do que um codão;
- O terceiro nucleótido é de menor importância.
- Objectividade – Um codão não pode codificar mais do que um aminoácido.
- Possui um codão de iniciação (Tripleto AUG) – codifica o aminoácido metionina.
- Possui codões de finalização (Tripletos UUA, UAG, UGA) - não correspondem a nenhum aminoácido; provocam o fim da síntese proteica.

Síntese Proteíca
A chave para a síntese proteíca encontra-se no DNA. Cada cadeia de DNA é composta por zonas úteis para a síntese, chamadas genes, e é a combinação destes genes que formam o genoma, que define as características comuns a todos os humanos.
Mas como é que estes moléculas geram uma estrutura tão complexa como uma proteína?
Bem, primeiro, necessitamos de isolar cada cadeia , é aí que entra a RNA-polimerase. Esta enzima liga-se a uma área específica de uma cadeia (a zona 3’) e quebra as ligações de hidrogénio presente entre as duas cadeias de nucleótidos, (no sentido 5’ – 3’, sempre), permitindo que se forme várias cadeias complementares ao DNA, tal como o precesso de replicação, excepto que agora temos RNA a formar-se, e não uma nova cadeia de ADN.
O RNA pré-mensageiro é libertado e as cadeias voltam-se a unir.
Esta fase chama-se transcrição, faz-se no núcleo, nos eucarionte, ou no citoplasma dos procariontes.

De seguida, há que retirar as partes inúteis, pelo que entra de nova a RNA polimerase, que separa as partes inúteis (intrões) dos segmentos com código genético.
Chama-se a esta parte Processamento.

A este RNA se chama mRNA, ou RNA mensageiro, que está agora no citoplasma.
O seguinte conjunto de fases chama-se Tradução e é composto por três fases.
Iniciação:
O mRNA vai encontrar uma sub-parte de um ribossoma que se irá ligar a ele, mais específicamente na zona 5’, ficando o mRNA com os nucleótidos virados para cima. A sububnidade vai então deslizar pelo mRNA até encontrar o codão de iniciação (AUG).
Então, a subunidade menor irá encontrar um conjunto de três nucleótidos cujas bases azotadas serão Adenina, Uracilo e Guanina (AUG), agora, o tRNA cujo codão (denominado anti-codão) é complementar ao AUG ligar-se-à ao mRNA.

Quando isso acontece, a subunidade maior liga-se à subunidade menor.

Alongamento:
Um segundo tRNA liga-se ao mRNA, os dois aminoácidos ligam-se por uma ligação peptídica.
O primeiro aminoácido é libertado e o seu tRNA é expulso, o ribossoma anda 3 nucleótidos no sentido 5’-3.
Este processo continua até se incializar a finalização.

Finalização: O ribossoma encontra um codão de finalização e dissocia-se, pois a eles (UAA, UAG, UGA) não se ligam nenhuns tRNA.
A proteína é libertada.

Resumo da síntese proteíca:

É facil agora compreender como é que mutações genéticas podem causar sérias doenças. Se um codão for alterado, o indivíduo irá formar proteínas diferentes da de um ser saudável.
As hormonas vegetais influenciam o crescimento das plantas. Esss movimentos podem ser classificados em tropismos e nastias. O primeiro involve crescimento com a mesma direcção (qualquer dos sentido) de um estímulo, o segundo é um movimento cuja direcção não é influenciada pelo estímulo.

As hormonas são as seguintes:
Auxinas: Produzido através da luz, no ápice das caules, em sementes, nas folhas jovens, nas flores, nos frutos e nos grãos de pólem.
Deposi de criadas, viajam para o lado contrário e estimulam o crescimento de umas células chamadas meristemas, que causam a curvatura da planta em direcção do estímulo.
Graças a esta propriedade, e também ao facto de que as raizes são inibidas quando o caule é estimulado, as auxinas provocam o graitropismo.
Ela inibie o desenvolvimento de gomos (ramos) laterais, establecendo assim uma dominância apical.
Inibe também a abcissão, impedindo que as folhas e os frutos caiam.
Ela desenvolve os frutos e o enraizamente de estacas caulinares.
Giberalinas: Alongam, lentamente, os caules. Germinam as sementes, floram as plantas e maturam os frutos.
Citoquininas: Promovem a divisão celular merisitimática e estimulam a aparição de gomos laterais, inibindo também o desenvolvimento das raízes. Retardam o envelhecimento.
Etileno: Hormona gasosa que matura as células, estimulando a abscissão. Serve como protector, fechando as áreas feridas ou isolando as infectadas.
Ácido abscísico: Inibe o crescimento. Contraria a germinação das sementes e o desenvolvimento dos gomos. Fecha os estomas e promove a abscissão.
O desevolvimento da planta depende da interacção entre as hormonas, que estão dependentes do meio.
Esta característica pode ser explorada para infundir crescimento articial nas plantas. Usando giberalinas podemos forças as sementes a germinarem numa época não propícia a esse acto, e com um tratamento de auxinas, podemos fazê-las dar fruto.
Isto é de grande utilidade na indústria, porém pode causar mutações prejudiciais na planta, que se vão reflectir na pessoa que a ingere.
Os seres vivos necessitam de regular o seu interior, fazem assim através de um sistema de feedback/retroalimentação negativa onde um estímulo cria uma mensagem hormonal (química) ou nervosa (eléctrica) que é transmitido a um orgão responsável pela área afectada que, por sua vez, emite uma resposta (química ou eléctrica) que elimina o estímulo.

Começaremos pelo sistema nervoso, o mais rápido.
Sistema nervoso (animais só)
O sistema nervoso pdoe ser classificado em dois: o sistema nervoso central (cérebro e espinal medula) e periférico (o resto do corpo)
As mensagens nervosas passam-se através de impulsos eléctricos e de neurónios.

Os neurónios passam impulsos eléctricos das dendrites, que os captam, para a terminação do axónio, onde será passado para outro neurónio.
O axónio tem uma composição muito peculiar. O interior do axónio está carregado negativamente e o exterior, positivamente. Ambos os meios possuem moléculas negativas, mas a presença de bombas sódio-potássio controlam o número de K+ e de Na+ no axónio. Isso significa que a quantidade de K+ dentro da célula não é suficiente para carregar positivamente o neurónio. (Potencial de Repouso : - 70 milivolts)
Quando o neurónio é estimulado (coisa que só acontece quando um estímulo de certa intensidade ocorre), os canais de Na+ numa determinada zona são abertos, isto vai causar uma “enchente” de sódios que vão depolarizar o axónio (potencial de acção: 35 mV).
Isto vai causar a abertura dos canais potássio que vai causar uma repolarização do axónio.

Porém, isto vai originar a abertura dos canais sódio na zona ao lado, provocando assim a propagação do estímulo ao longo do neurónio.

Enquanto esta mensagem é rápida, seres mais evoluídos como os humanos necessitam de uma transferência ainda mais rápida, é aí que entra a bainha de mielina (interrompida nos nódulos de Ranvier), ora, como a bainha é impermeável, os sódio e potássio só podem saír e entrar nos nódulos. Enquanto que num axónio anfíbio, a mensagem propaga-se por 5 metros em x saltos (y segundos), num axónio humano, a mensagem demora x/8 segundos a prcorrer 5 metros, por faz apenas uma fracção muito pequena dos saltos.

Porém, para um neurónio ficar excitado, é preciso que algo o excite. Um neurónio inicial vai ser excitado pelo meio, mas ele tem de passar a sua mensagem a outro neurónio. Ora, nós sabemso que entre dois neurónios exite um espaço, a falha sináptica.
Quando o impulso chega à terminação do axónio, funde uma vesícula contendo substâncias chamadas neurotransmissores com a parede membranar pré-sináptica (antes da sinapse, isto causa a libertação das subtâncias para a fenda. No outro extremo, nas dendrites, encontramos receptores de neurotransmissores que, quando na presença dos mesmos, se abrem e permitem a entrada de iões Na+, causando a propagação do sinal.
Muitas drogas exploram este mecanismo para causar impulsos eléctricos artificiais.

Um exemplo de regulação associada ao sistema nervoso é a Termorregulação, ou seja, a regulação térmica.
Os animais pode ser classificados como homeotérmicos/poiquilotérmicos baseado na sua capacidade de regular a sua temperatura ou falta dela, respectivamente ou endotérmicos/ectotérmicos baseado na fonte de aquecimento (se é interna ou externa).
Este factor limita os meios em que um indivíduo pode estar, pois tem um grande potêncial de letalidade, não obstante a regulação térmica.
Esta regulação é efectuada a partir do hipotálamo e detectado, tanto pelo mesmo, como pela pele. Este estímulo irá gerar uam resposta que será enviada por um impulso nervoso aos órgãos efectores onde se irão gerar as respostas de feedback.

No caso do estímulo se encontrar sob a forma de calor.

No caso do estímulo se encontrar sob a forma de frio.
Sistema hormonal (ou endócrino) nos animais:
Quando um estímulo é detectado, certas células produzem hormonas que agem como mensageiros, viajando na corrente sanguínea, sendo detectados pelas células-alvo que depois as assimilam e eliminam o estímulo através de feedback.

Um exemplo de regulação hormonal é a Osmorregulação
A regulação dos fluidos corporais e dos tecidos encontra diversas soluções na dependência do ambiente em que os animais vivem. A osmorregulação envolve a troca de sais e de água entre os organismos e o meio externo, de modo a compensar os ganhos ou as perdas inconvenientes. Conclusão os animais podem-se classificar:
· Osmorreguladores – animais cujo organismo regula a pressão osmótica interna de acordo com a mesma no exterior
· Osmoconformantes – animais cujo organismo não regula a concentração de sais nos seus fluidos corporais, logo, a concentração interna desses sais varia de acordo com a sua concentração no exterior.
Os animais marinhos correm o perigo da desidratação, ao passo que os de água doce correm o perigo de inundação dos seus tecidos por água.
Os peixes ósseos, aves e répteis marinhos bebem água do mar, substituindo a que perdem por osmose. No entanto, têm de segregar activamente sais para o exterior. Os peixes fazem-no através de células de cloro que existem na base dos filamentos branquiais; as aves e répteis marinhos utilizam uma glândula de sal nasal. A urina é concentrada (isotónica) e em pequena quantidade.
Os peixes de água doce não bebem água, substituindo os sais perdidos através da absorção activa nas células de cloro da base dos filamentos branquiais. Os seus rins têm grandes cápsulas e a urina é muito diluída e em grande quantidade (hipotónica).
Nos Vertebrados terrestres, os Anfíbios, por exemplo, regulam a taxa de filtração do glomérulo recorrendo à bexiga para retenção de água.
Quanto aos Répteis e Aves, excretam ácido úrico devido à sua grande actividade e perda de água por transpiração. Para além disso, como são animais ovíparos e amníotas, a acumulação de ácido úrico (osmotícamente inactivo e pouco tóxico) no alantóide não põe em risco a sobrevivência do embrião.
Os Mamíferos produzem uma urina hipertónica e dispõem de mecanismos hormonais que ajudam a regular o volume de fluidos do corpo.
Os animais do deserto, para além de determinados comportamentos (como hábitos nocturnos, ausência de glândulas sudoríparas, etc.), têm ansas de Henle extremamente longas a fim de se dar uma reabsorção total de água e não haver perdas deste líquido na excreção.
Essa regulação resulta de mecanismos hormonais de retroalimento negativa. A tonicidade da urina e a quantidade de água reabsorvida nos nefrónios dependem da permeabilidade dos tubos desta estrutura, que por sua vez, é regulada pela ADH.

 A unidade funcional renal, que esta envolvida na eliminação de produtos do metabolismo é o nefrónio, este irá ser importante na regulação. Mantém o equilíbrio osmótico dos fluidos internos e excreta substâncias formando urina.
Sistema hormonal nas plantas
As hormonas vegetais influenciam o crescimento das plantas. Esss movimentos podem ser classificados em tropismos e nastias. O primeiro involve crescimento com a mesma direcção (qualquer dos sentido) de um estímulo, o segundo é um movimento cuja direcção não é influenciada pelo estímulo.

As hormonas são as seguintes:
Auxinas: Produzido através da luz, no ápice das caules, em sementes, nas folhas jovens, nas flores, nos frutos e nos grãos de pólem.
Deposi de criadas, viajam para o lado contrário e estimulam o crescimento de umas células chamadas meristemas, que causam a curvatura da planta em direcção do estímulo.
Graças a esta propriedade, e também ao facto de que as raizes são inibidas quando o caule é estimulado, as auxinas provocam o graitropismo.
Ela inibie o desenvolvimento de gomos (ramos) laterais, establecendo assim uma dominância apical.
Inibe também a abcissão, impedindo que as folhas e os frutos caiam.
Ela desenvolve os frutos e o enraizamente de estacas caulinares.
Giberalinas: Alongam, lentamente, os caules. Germinam as sementes, floram as plantas e maturam os frutos.
Citoquininas: Promovem a divisão celular merisitimática e estimulam a aparição de gomos laterais, inibindo também o desenvolvimento das raízes. Retardam o envelhecimento.
Etileno: Hormona gasosa que matura as células, estimulando a abscissão. Serve como protector, fechando as áreas feridas ou isolando as infectadas.
Ácido abscísico: Inibe o crescimento. Contraria a germinação das sementes e o desenvolvimento dos gomos. Fecha os estomas e promove a abscissão.
O desevolvimento da planta depende da interacção entre as hormonas, que estão dependentes do meio.
Esta característica pode ser explorada para infundir crescimento articial nas plantas. Usando giberalinas podemos forças as sementes a germinarem numa época não propícia a esse acto, e com um tratamento de auxinas, podemos fazê-las dar fruto.
Isto é de grande utilidade na indústria, porém pode causar mutações prejudiciais na planta, que se vão reflectir na pessoa que a ingere.
Já se estableceu que todas as células necessitam de oxigénio para fabricar compostos e precisam de excretar CO2 e outros gases. O sistema usado para esses transportes de gases diferem nos seres vivos.
Nas plantas:
O dióxido de carbono e o oxigénio são captados e eliminados pelas folhas através de estomas. Estas estruturas também controlam a perda de vapor de água.
Os estomas são compostos por duas células-guarda unidas numa estrutura oval.

A parede interior destas células estomáticas é mais rígida que a exterior, portanto, sempre que as células-guardas estiverem túrgidas (por osmose causado por excesso de água na planta), e visto que as duas paredes têm uma rigidez diferente, elas vão curvar para fora, abrindo o ostíolo, permitindo uma maior perca de água.
Verifica-se também o caso contrário. Se a planta tiver falta de água, as células estomáticas plasmolisadas vão perder água, diminuindo a curvatura e fechando o ostíolo.
A concentração de sais das células estomáticas é controlada pela absorção activa do catião K+ , se a planta tiver excesso de água, verifica-se uma maior transferência de K+ para o estoma, sendo depois perdidos por transporte passivo quando a planta estiver regulada.
O estado dos estomas também é influenciado pela quantidade de luz, pela temperatura, o vento, etc.
Nos animais:
Tanto pode ser directa (entre o meio e as células) ou indirecta (através de hematoses para um fluido circundante).
Directa:
A sua superfície respiratória é fina, húmida, densas em vasos sanguíneos e extensas.
Acontecem em seres pouco evoluídos, como a planária, nos anfíbios e em certos peixes.
A michoca possui um sistema ligeiramente melhorado, com um sistema circulatório a fazer trocas directas com o meio pelo tegumento.
Indirecta:
Por brânquias (peixes): zonas onde arteríolas e vénulas se juntam por uma extensa rede de capilares, o sangue venoso atravessa a rede (lamela) e atinge a arteríola. O peixe, ingerindo água, faz passá-la no sentido contrário ao do sangue, enquanto ambos trocam gases. Este mecanismo de contra-corrente permite uma maior oxigenação do sangue, visto que aumenta artificialmente o tempo de exposição (aumentando a quantidade de oxigénio absorvido para o sangue).
A água é depois expelida de novo para o meio.

Por traqueias (insectos): Os insectos possuem uma rede de tubos, chamados traquíolas que vão convegir em tubos maiores (traqueias), estas traqueias vão contactar com o meio através de orifícios na superfície corporal chamados espiráculos. Dependendo do grau de evolução dos seres, a abertura do espiráculo é controlada.
Por pulmões:

Nos mamíferos:
A superfície respiratória é composta por órgãos chamados pulmões. Estes “sacos de ar” têm uma parede musculosa e vasculada, repleta de alvéolos, que são cobertos por sacos alveolares, onde se realizam as trocas entre o sistema circulatório e o ar dentro do pulmão.
Nas aves:
Os pulmões estão guarnecidos de sacos aéros que agem como reserva de ar, melhorando a ventilação, diminuindo a densidade da ave e ajudando a dissipar calor.
Utilização da glicose para fabrico de energia
Existem dois tipos de obtenção de energia, as fermentações (anaeróbias-realizadas na falta de oxigénio) e a respiração aeróbia (na presença de oxigénio, como o nome indica), elas, essencialmente, são reacções de catabolismo(de ruptura de moléculas, ao contrário das reacções de anabolismo, onde se formam ligações, absorvendo energia.)
Existem vários tipos de fermentação, porém, as mais importantes, são as fermentações alcoólicas e lácticas.
Há uma fase comum a todos os tipos de obtenção de energia, a glucólise.
Dois ATP’s são dissociados para fosforilar a glucose com dois P’s, formando-se a frutose-difosfato, um composto instável ,que se vai separar em dois compostos com três carbonos e um fosfato. De seguida, um NAD+ (outro transportador de electrões) é reduzido, ficando NADH (logo perdendo dois H’s), e formam-se dois ATP’s, um a partir de um fosfato errante, e outro a partir do fosfato presente no composto.
As moléculas resultantes têm 3 carbonos e chamam-se ácido pirúvico(C3H4O3)
(NOTA: A partir de agora, cada ciclo deve ser multiplicado por dois, visto que estamos na presença de duas moléculas, cada uma copm o seu próprio percurso)

A glucose tem um saldo energético de dois ATP’s e passa-se no citoplasma/hialoplasma.
Vamos começar pelas fermentações, que são muito mais simples que a respiração aeróbia.
Fermentações
A fermentação alcoólica começa com a glicólise, como já foi dito, sendo precedida por uma descarboxilação (perca de CO2) , transformando-se em acetaldeído, transformando-se em álcool etílico, depois de usar um NADH, transformando-o em NAD+

Ilustração 3 - Fermentação alcoólica.
A fermentação láctica é mais simples.
O piruvato é directamente convertido em ácido láctico, depois de queimar NADH.

Ilustração 4 - Fermentação láctica
Como podemos comprovar, não houve mais ganhos de energia para além da glucólise, ou seja o rendimento energético das fermentações equivalem a dois.
Respiração aeróbia
A respiração aeróbia é muito mais complexa.
Temos a glicose, e depois temos a 2º fase, a formação do acetil-coenzima A.
Esta fase passa-se na mitocôndria, perde uma molécula de CO2 e um hidrogénio (formando um NADH)

Ilustração 5 - 2º Fase da Respiração Aeróbia
A 3º etapa é outro ciclo, chamado Ciclo de Krebs ou ciclo do ácido cítrico.
No Ciclo de Krebs, o Acetil-CoA liga-se com o ácido oxaloacético, um composto com quatro carbonos, formando o ácido cítrico, com seis carbonos, sendo descarboxilado duas vezes, formando dois NADH, de seguida, forma um ATP’s, um FADH2 (outro transportador de electrões) e outro NADH voltando-se ao Ácido oxaloacético.

Ilustração 6 - Ciclo de Krebs
A fase final é a Fosforilação oxidativa.
Os NADH e FADH2 são conduzidos para uma cadeia de proteínas, libertando os seus electrões, que vão percorrer a cadeia, visto que cada um é mais “magnético” para electrões que o anterior, estas sucessivas oxidações libertam energia, energia que vai ser utilizada para fosforilar 17 ADP’s. O seu aceptor final é um átomo de oxigénio que é libertado e se junta a dois protões de hidrogénio libertados pelos NADH e FADH2, formando o H2O expelido pelas plantas.
Lembre-se que este processo funciona para uma molécula de piruvato, quando existem dois por glicose, logo, a fosforilação oxidativa tem um saldo de 34 ATP’s no total e o ciclo de Krebs tem um saldo de dois.
Comparando os dois, vemos que a respiração aeróbia tem um saldo de 38 ATP’s.
2- Glucólise
2-Cicle de Krebs
34- Fosforilação oxidativa.
Enquanto que a fermentação tem um saldo de dois, proveniente da glucólise.
Vemos que a respiração em presença de oxigénio é 19 vezes mais eficiente que a fermentação, e mesmo assim, não aproveita o potencial inteiro da molécula da glucose, aproveitando apenas ≈40% da energia nela contida.

Ilustração 7 - Fosforilação oxidativa